近日,大连理工大学刘田教授团队阐明了昆虫表皮鞣化交联的关键机制,揭示了节肢动物登陆演化的分子证据,并据此开发出兼具杀虫活性与水产生态安全性的绿色先导化合物。相关论文以“Insect-specific aldehyde synthase governs cuticle strength: a selective insecticide target”为题,发表于《Science Advances》。这是该团队在昆虫表皮形成机制解析及绿色农药靶标发现领域取得的又一重要突破。
研究背景
节肢动物是地球上演化最为成功的动物门类,已知物种占动物界总数的80%以上,其繁盛很大程度上归功于几丁质和蛋白质构成的多功能外骨骼。为适应不同生存环境,水生与陆生节肢动物演化出了截然不同的外骨骼加固策略:水生类群(如虾、蟹)主要依赖碳酸钙矿化,而陆生类群(如昆虫)则采用以儿茶酚氧化交联为核心的鞣化策略,实现了轻质与坚固的完美兼顾,为昆虫适应陆地环境及飞行提供了生理基础。传统理论认为表皮鞣化主要依赖多巴胺衍生的交联前体(NADA、NBAD等),近年来3,4-二羟基苯乙醛(DHPAA)被发现是一种新型前体,但其合成酶(DHPAAS)在鞣化过程中的确切功能与分工长期未明(图1)。
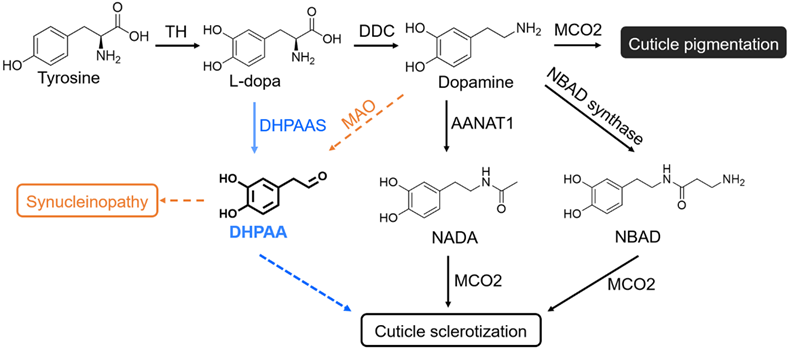
图1. 昆虫表皮鞣化通路。TH,酪氨酸羟化酶;DDC,多巴脱羧酶;DHPAAS,3,4-二羟基苯乙醛合酶;AANAT1,芳烷基胺N-乙酰转移酶1;NBAD synthase,N‑β‑丙氨酰多巴胺合酶;MCO2,多铜氧化酶2;MAO,单胺氧化酶。昆虫和人类的DHPAA合成途径分别以蓝色和橙色显示。
昆虫DHPAAS的生理功能
为探究DHPAAS的生理功能,该团队选取具有柔软表皮的果蝇和坚硬表皮的黄粉虫进行RNAi实验。果蝇DHPAAS基因沉默组的幼虫化蛹延迟或失败,幼虫和蛹的体宽增加(图2A-B),类似表皮蛋白TweedleD/Cpr11A缺失导致的“tubby”表型(Commun. Biol. 2021, 4, 88),提示表皮力学下降。黄粉虫DHPAAS基因沉默组的成虫最终100%死亡,体色更黑,背甲和鞘翅的机械性能下降(图2C-E)。DHPAAS和DDC参与表皮鞣化(化学交联和色素沉积),但二者对表皮机械性能的作用未知,因此团队对直翅目害虫东亚飞蝗进行单基因以及双基因沉默的RNAi实验。飞蝗DHPAAS基因沉默会导致飞蝗成虫死亡,胫节弯曲,且胫节的机械性能下降(图2F-H)。DDC基因沉默导致飞蝗表皮颜色变浅,胫节的机械性能与对照组无显著差异。此外DHPAAS基因沉默组飞蝗的飞行角度和圈数下降,DDC基因沉默组仅飞行圈数下降(图2I)。上述结果表明在飞蝗中,DHPAAS对表皮机械性能更重要。
图2.昆虫DHPAAS沉默的表型及表皮机械性能的表征。(A) 果蝇野生型(WT) 和DHPAAS RNAi后的化蛹率。(B) 果蝇WT和RNAi组的表型。(C) 黄粉虫DHPAAS沉默的死亡率。(D) 黄粉虫的表型。(E) 黄粉虫背甲纳米压痕和鞘翅拉伸。(F) 东亚飞蝗DHPAAS和DDC单基因沉默或双基因沉默后飞蝗的存活率。(G) 东亚飞蝗的表型。(H) 东亚飞蝗胫节的压缩测试。(I) 东亚飞蝗飞行能力测试。
昆虫DHPAAS的催化机理及关键残基
现有果蝇DHPAAS的晶体结构缺少催化柔性环(328-341),其催化机理及关键氨基酸残基尚不明确。该团队使用AlphaFold进行全长结构预测,构建反应中间体,结合分子动力学模拟与定点突变实验,阐明DHPAAS的催化机理(图3A-G)。DHPAAS催化反应的第一阶段的脱羧过程与DDC相同;第二阶段氧化脱氨过程中氧气通过Val328所在关卡的疏水通道进入活性口袋,Asn192和Tyr332通过氢键稳定氧气和反应中间体,Arg330可以Glu196形成氢键以稳定催化柔性环(图3I)。
图3. 昆虫DHPAAS的催化机理及关键残基功能。(A) 果蝇DHPAAS的晶体结构与AlphaFold预测模型。(B) MD模拟显示果蝇DHPAAS中反应中间体的构象,以及O2与Asn192、Tyr332和中间体之间的距离。(C) MD模拟识别出的O2进出通道。(D) AlphaFold预测的果蝇DHPAAS和DDC的结构比较。(E) 昆虫DHPAAS与DDC的序列比对。(F) 使用ADHP/HRP测定果蝇DHPAAS野生型及突变体产生的H2O2。(G, H) LC–MS检测果蝇DHPAAS野生型及突变体反应体系产生的DHPAA和多巴胺。(I) 昆虫DHPAAS的催化机理。
靶向昆虫DHPAAS的杀虫剂先导分子发现
为获得DHPAAS的抑制剂,基于反应中间体构建药效团模型并进行虚拟筛选,获得查尔酮衍生物(图4A)。测试化合物中,化合物6(2,5,2',4'-四羟基查尔酮)对果蝇DHPAAS抑制效果最好(IC50 = 10.6 μM),且对果蝇DDC与人源DDC的IC50是对果蝇DHPAAS的5.2倍和7.5倍(图4B-D)。分子对接结果表明化合物6与果蝇DHPAAS的催化残基Asn192形成氢键,而与DDC的结合模式存在差异(图4E-F)。化合物6注射导致飞蝗死亡,且出现胫节弯曲的表型,与DHPAAS基因沉默的表型一致(图4G)。测试浓度下,水生节肢动物大型蚤和水生脊椎动物斑马鱼在含有化合物6水中存活率不受影响(图4H-I)。这些结果表明化合物6具有作为候选杀虫剂的潜力,为“稻-虾共作”、“稻-蟹共作”等生态农业综合种养提供极具产业化前景的先导化合物与解决方案(图4J)。
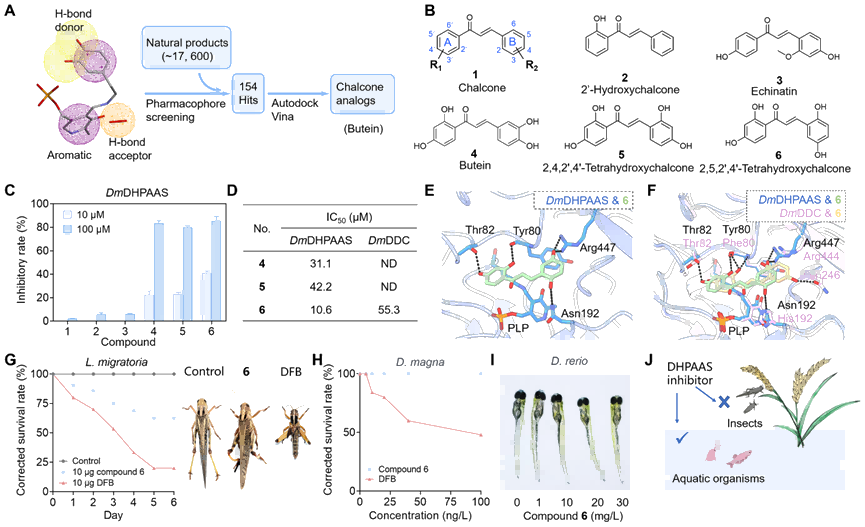
图4. DHPAAS抑制剂的发现与活性测定。(A) 虚拟筛选流程图。(B) 查尔酮及其衍生物的化学结构。(C) 使用H2O2试剂盒测定查尔酮衍生物对果蝇DHPAAS的抑制活性。(D) 化合物对果蝇DHPAAS和DDC的IC50值。(E) 化合物6在果蝇DHPAAS中的预测结合模式。(F) 化合物6在果蝇DHPAAS和DDC中的结合模式。(G) 化合物6或商品化杀虫剂除虫脲(DFB)注射蝗虫后的存活率及表型。(H) 大型蚤暴露于化合物6或DFB的存活率。(I) 斑马鱼在暴露于化合物6后的代表性图像。(J) DHPAAS作为选择性杀虫剂的作用机制。
本研究的进化生物学意义
面对富氧环境、钙源有限以及飞行机械需求,昆虫进化出基于儿茶酚的表皮硬化策略。催化儿茶酚氧化交联的多铜氧化酶2(MCO2)具有昆虫特异性,DHPAAS也仅存在于昆虫,而DDC广泛分布于节肢动物(图5A)。据此提出昆虫独特地利用氧化脱氨途径,将多巴转化为交联前体DHPAA,再由MCO2驱动氧化完成交联(图5B)。这种方式区别于无机矿物沉积,可在不显著增强整体质量的情况下强化表皮,对维持昆虫运动与飞行能力具有重要适应意义(图5C)。
图5. 表皮硬化通路的进化。(A) MCO与芳香族氨基酸脱羧酶的系统发育树。(B) DHPAA在昆虫表皮硬化通路中的作用。(C)表皮硬化通路:轻质硬化与高负荷矿化。
该研究开辟了以昆虫表皮鞣化关键酶为靶标的新型绿色农药研发方向,贯通了“机制解析—靶标确证—分子创制”的完整创新链条,为我国生态农业高质量发展和农业绿色防控提供了强有力的科技支撑。